尼安德特人的形成与消失:化石、年代学、古基因组与人口史的证据审查
摘要:尼安德特人的形成和消失,都涉及尺度不同、不能互相替代的历史过程。祖先群体的遗传分化、可辨认形态的逐步形成、考古记录中的末次出现,以及独立繁殖群体的终结,分别需要不同证据。本文以欧洲为中心,纳入西亚与阿尔泰地区,通过化石形态、埋藏学、年代学、古蛋白质、古基因组与人口模型的交叉审查,提出三点判断:第一,尼安德特人的形成更适合被理解为中更新世人群结构变化中的长期分化,而非一个具备明确日期的起源事件;第二,约四万年前的消失是区域不同步的人口过程,现有材料不足以建立覆盖整个分布区的单一因果解释;第三,尼安德特人向智人的遗传贡献已经得到确认,但基因渗入的存在,不能直接证明全部晚期群体通过融合延续,也不能量化融合对其消失的贡献。2026 年西北欧古基因组研究尤其表明,必须谨慎处理由边缘地区小样本推及全体尼安德特人的论证。1
关键词:尼安德特人;中更新世;旧石器时代中—晚期过渡;年代学;古基因组;历史因果。
阅读约定:资料核查截至 2026 年 9 月 11 日。下文一般年代采用距今约数;引用放射性碳结果时,区分未经校正的 ¹⁴C BP 与校正后的 cal BP,两者的 BP 均以公元 1950 年为基点。ka 表示千年,Ma 表示百万年;遗传分化年代是模型估计,不自动等于考古学的校正年代。图片采用七张真实标本或遗址照片,以及一幅包含壁面照片与研究者描图的原论文图版;图注说明其性质、来源和许可。
一、研究对象:怎样为一个没有文字的人群写历史
尼安德特人通常被称为 Homo neanderthalensis。这里的“人”不是宽泛的修辞:他们属于人属,具有复杂的工具生产、资源利用和社会联系。现代所有现生人群属于智人(Homo sapiens);尼安德特人与智人之间的关系,需要用共同祖先、群体分化和后来的基因交流来解释。一个把尼安德特人放在猿与现代人之间、将其视为某一级“未完成的人”的线性序列,无法表达这种亲缘结构。
将其列为独立物种,还是智人的一个亚种,涉及物种概念、形态差异与生殖隔离程度的不同权重。本文沿用独立种的常见命名,同时将“支系”“人群”作为主要分析单位。存在能够继续繁殖的混合后代,说明生殖边界并非绝对;它并不能单独裁决所有分类问题。分类名称应帮助描述长期差异,不应替代人口史本身。2
对历史学者而言,最大的困难在于证据与解释之间的距离。我们没有尼安德特人的自述、谱牒和制度文本,不能从一组基因直接读出婚姻规则,也不能从一处洞穴直接重建“部落政治”。但缺少文字并不取消历史研究的可能性。研究的任务,是明确每一类材料能够约束什么,并追踪推理经过哪些中间环节。
| 材料 | 可以直接观察或测量的内容 | 经过分析可以支持的解释 | 不宜单独推出的结论 |
|---|---|---|---|
| 化石形态与病理 | 骨骼结构、损伤、愈合及个体发育状态 | 形态亲缘、部分生命史与身体负担 | 民族身份、语言内容、完整社会制度 |
| 地层与埋藏学 | 沉积关系、扰动、骨骼位置、切割及啃咬痕迹 | 遗物是否大体同期,遗骸形成过程 | 同一层内所有物件由同一个人群制造 |
| 测年材料 | 特定样品的物理或化学信号 | 样品与关联事件的年代范围 | 一个大陆上最后一个人的死亡日期 |
| 石器、骨器与使用痕迹 | 原料、加工顺序、残留物及磨损 | 技术传统、操作行为、资源利用 | 一种器物风格对应一个生物学物种 |
| 古 DNA、古蛋白质 | 留存分子与参考序列之间的关系 | 生物学归属、亲属关系、部分人口过程 | 全体人口普查、个人情感、族群自称 |
| 人口与生态模型 | 假设条件下系统如何变化 | 某种机制是否可能,哪些参数敏感 | 模型中的过程已经原样发生于历史 |
本文据此区分三种叙述层次:观察结果、依赖模型的推断、尚待检验的历史解释。例如,“在一个个体中识别出长段尼安德特人祖源”是分析结果;“其几代之前有一位尼安德特人祖先”依赖重组模型;“两个群体存在稳定的通婚制度”则需要更多材料。层次的区分,比在句末笼统加一个“可能”更能提高论证的可检验性。
二、尼安德特人如何成为一个科学对象
1856 年,德国尼安德河谷的小费尔德霍夫洞穴出土一批人骨,其中的颅盖后来成为尼安德特人的模式标本。1856 年并不是人们第一次挖到今天会被归为尼安德特人的遗骸:例如直布罗陀头骨的发现更早。它的重要性在于,发现、比较解剖学讨论、命名和对“古老的人”的认识在这里发生了具有持续影响的结合。3
William King 在 1863 年提出相关命名,通常采用的分类学命名年份为 1864 年。关于最早口头报告、印刷提及和正式描述之间的区别,科学史研究仍值得细读。对历史学文章来说,将整个过程压缩成“1856 年发现一种新人类”,会抹去发现一块骨头与承认一个分类对象之间的知识劳动。4
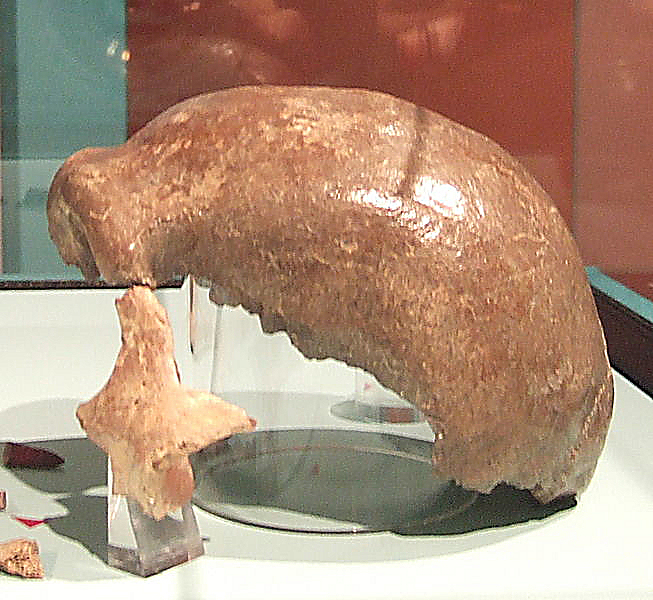
此后,尼安德特人曾被放进不同的解释框架:异常的现代个体、独立的古老物种、现代欧洲人的祖先,或被后来人群替代的演化旁支。相关争论不仅取决于新化石,也取决于研究者使用的分类规则,以及如何看待形态连续性与地理差异。科学史的意义在于追踪这些判断怎样形成,而不是将过去所有错误归结为研究者“缺乏常识”。
1997 年,Krings 等人分析了尼安德特人的线粒体 DNA,发现所测序列落在现生人类线粒体变异范围之外。这是突破,却只涉及一条母系遗传线索。某条母系谱系后来消失,与其他基因组片段通过混合后代保存下来,可以同时成立。因此,当时的线粒体结果不能被扩写成“已证明从未发生通婚”。5
2010 年的尼安德特人基因组草图,使问题发生根本变化。现代欧亚人群与尼安德特人共享遗传变异的模式,为基因交流提供了证据。“完全替代而没有任何遗传贡献”的强命题因而难以维持,但这也没有使智人的非洲起源失去意义。此后的任务变成:在非洲起源、向外扩散和后续混合的框架中,确定交流的时间、方向、次数和规模。6
三、诞生问题之一:先分清三种“起源年代”
研究者说尼安德特人“起源于四十多万年前”,与另一篇文章说他们和智人的祖先“在六七十万年前分开”,未必相互矛盾。它们可能在回答不同的问题。
第一种是遗传谱系的共同祖先年代,即比较的某一段 DNA 向过去追溯到共同祖先的时间。第二种是祖先群体分化年代,即人口模型中两个人群开始形成显著结构的时间。第三种是形态支系的可辨认年代,即现有化石记录何时已经能够支持尼安德特人亲缘归属。三者之间不能直接画等号。
一个群体在分化之前,本来就拥有内部遗传差异;分化之后,又可能继续发生一定程度的交流。不同基因组位置可以保存不同的谱系历史。正因如此,遗传共同祖先往往早于某个模型估计的人口分化,且单一的二叉树只是对复杂历史的简化。
高覆盖度阿尔泰尼安德特人基因组研究,曾将智人祖先与尼安德特人—丹尼索瓦人祖先群体的分化估计在约 55 万至 76.5 万年前。这个区间建立在特定突变率和人口模型之上,适合作为一个有文献出处的参照,不适合作为“第一位尼安德特人”的出生日期。研究同样揭示了古老群体之间的基因交流,使完全封闭、一次分叉的图景显得不足。7
| 常见表述 | 更准确的含义 | 使用时应保留的限制 |
|---|---|---|
| “智人与尼安德特人的祖先在六七十万年前分开” | 某些模型给出这一数量级的祖先群体分化时间 | 依赖突变率、世代长度、人口结构与基因交流设定 |
| “四十三万年前已有尼安德特人支系” | 骨坑的形态与核 DNA 支持当时已存在偏向尼安德特人的人群 | 不等于全部晚期典型特征已经同时具备 |
| “典型尼安德特人出现得更晚” | 较晚化石更集中呈现后来用于诊断的一组特征 | 分类阈值与化石样本会改变界线,不能另造一个绝对诞生时刻 |
| “四万年前灭绝” | 独立人群的可靠晚期记录大致在这一时期结束 | 不是精确到年的大陆同步事件,更不等于所有遗传后裔消失 |
这一区分对历史论证有实际后果。如果要解释某种身体特征的形成,气候适应与发育机制可能相关;如果要解释祖先群体为什么分化,则更需要讨论迁徙、地理隔离与人口联系;如果要解释为何某种化石首次出现,还必须考虑保存和发现的偶然性。同一个“起源”词语,不应掩盖因变量的变化。
四、诞生问题之二:中更新世欧洲与“骨坑”证据
1. “海德堡人”并不是已经解决的祖先身份证
传统叙述常把 Homo heidelbergensis,即海德堡人,放在尼安德特人与智人的共同祖先位置。然而,不同研究对这个名称的地理范围和标本集合并不一致。若把欧洲、非洲乃至亚洲一些中更新世化石一并纳入,名称本身就可能掩盖多个具有不同亲缘关系的人群。
因此,可以说尼安德特人的形成与欧洲中更新世人群密切相关;若进一步写成“海德堡人在欧洲变成尼安德特人,在非洲变成智人”,则必须交代采用哪一种海德堡人定义,以及哪些化石支持这种分支安排。Hublin 的起源综述讨论了欧洲化石之间的连续与差异,并比较了“两阶段”与“累积”模型;其价值是提出可检验的演化关系,而不是为所有中更新世化石发放一张统一的祖先证书。8
类似地,西班牙大坑遗址的先驱人(Homo antecessor)年代更早,也不意味着它自然就是尼安德特人的直系祖先。2020 年的牙釉质蛋白质研究,支持其与后来的智人、尼安德特人和丹尼索瓦人共同构成的支系具有接近的姐妹群关系。姐妹群与直接祖先是不同判断;仅有年代先后,也不能建立世系连接。9
2. 四十三万年前:骨坑为何成为关键地点
阿塔普埃尔卡不是一个只有单层遗存的“遗址”,而是包含不同地点与漫长年代序列的遗址群。大坑(Gran Dolina)与骨坑(Sima de los Huesos)必须区分。关于先驱人的研究,与关于约 43 万年前骨坑人群的研究,所依据的地点、样品和年代并不相同。
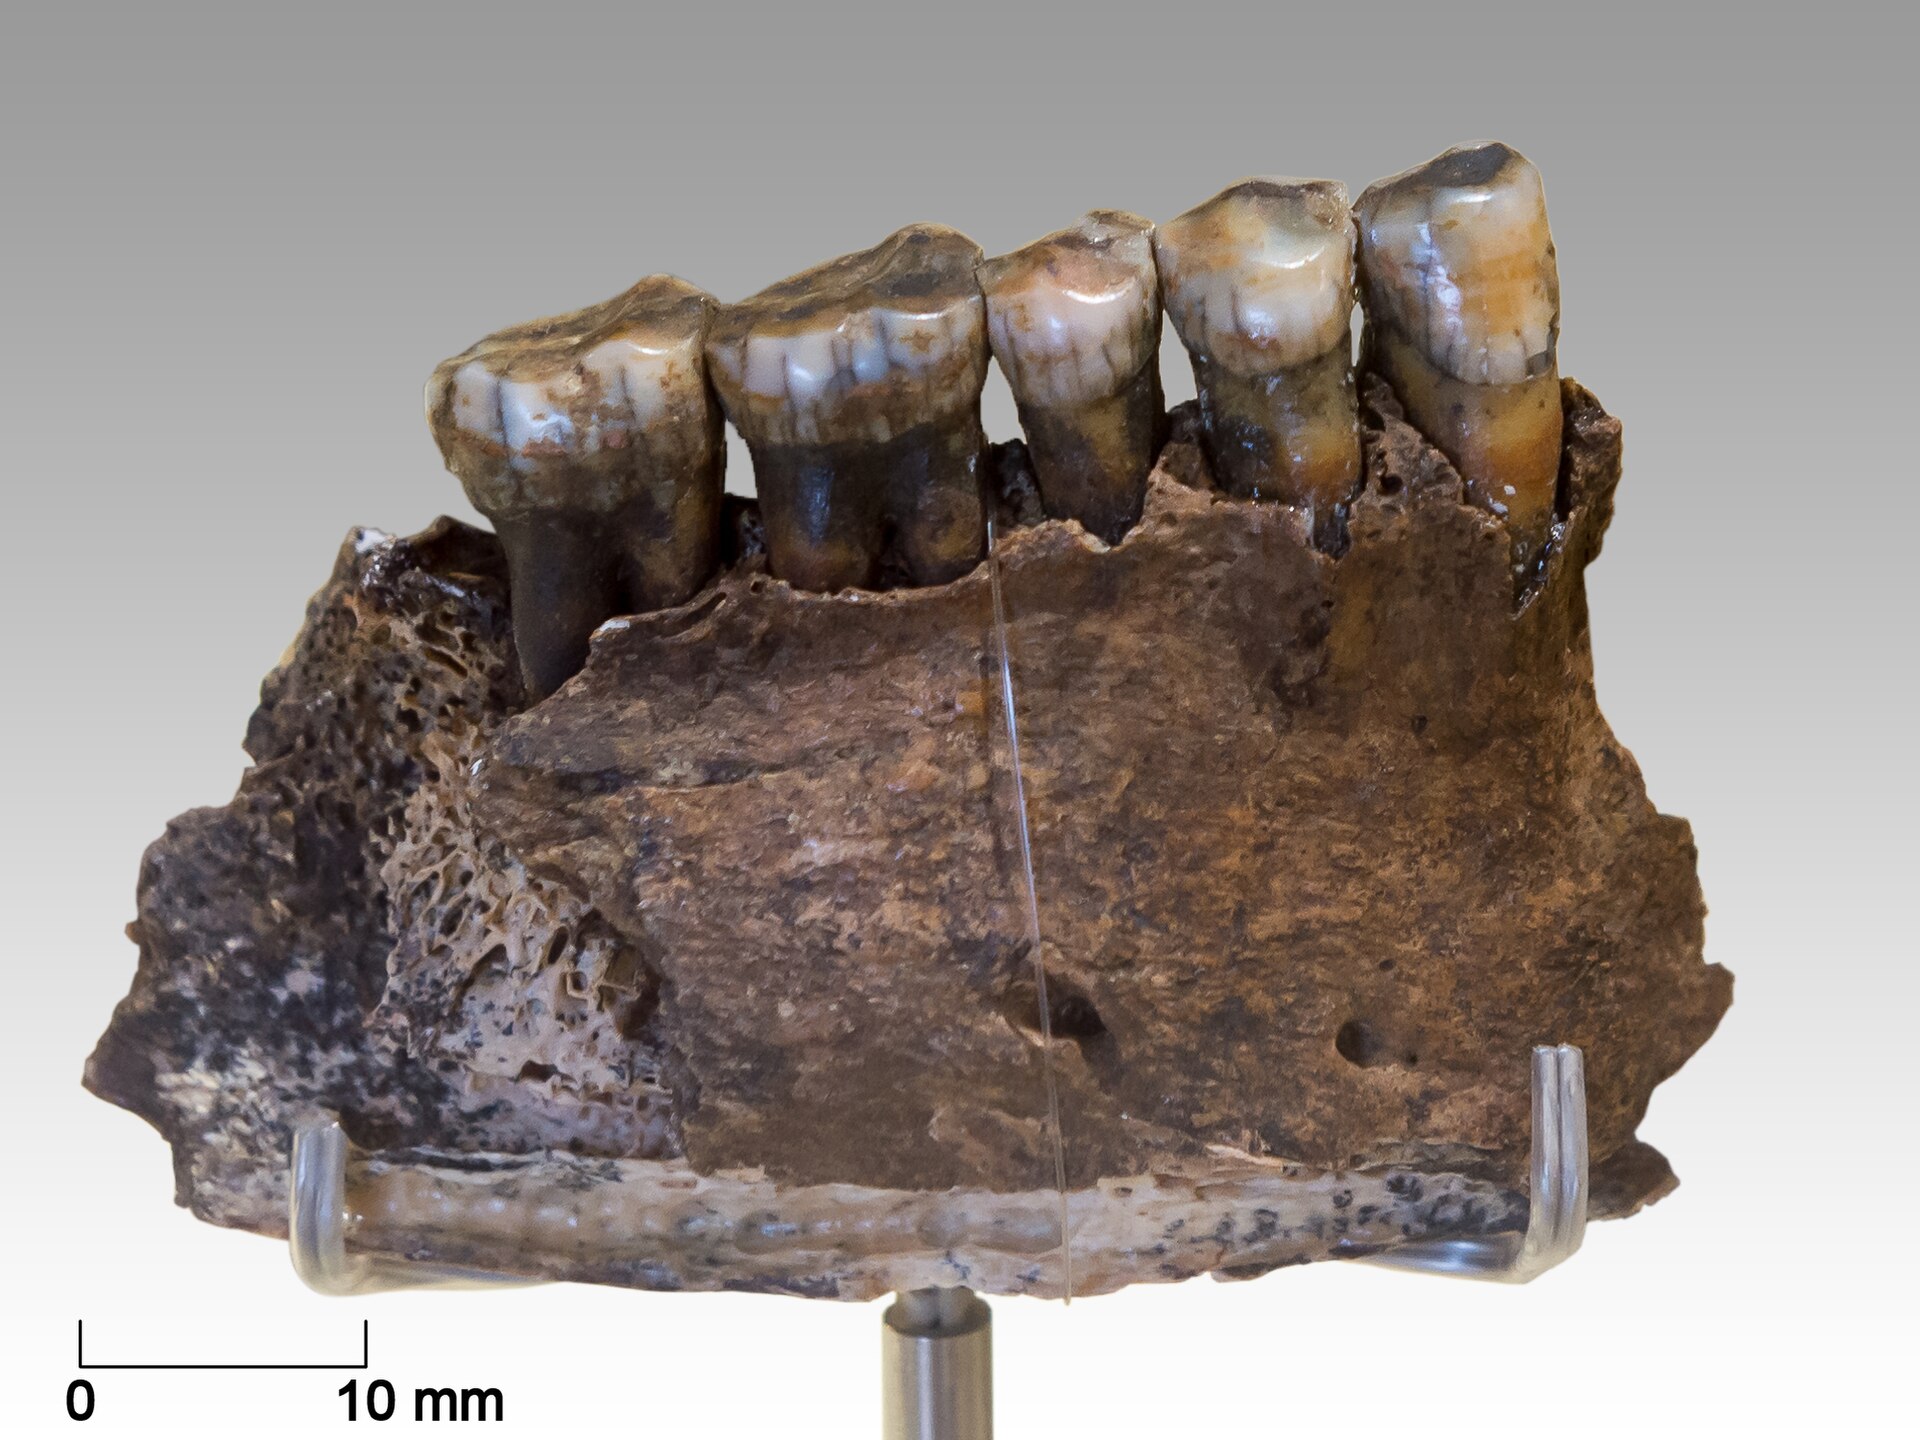
2014 年,Arsuaga 等人公布对骨坑 17 个头骨的分析,将其置于约 43 万年前的年代框架。面部、牙齿和咀嚼相关结构表现出尼安德特人的亲缘特征,而颅脑等其他结构没有简单同步变化。这一组合支持镶嵌式演化:不同解剖模块以不同速度发生变化,不能要求一种新形态的所有特征同时登场。10
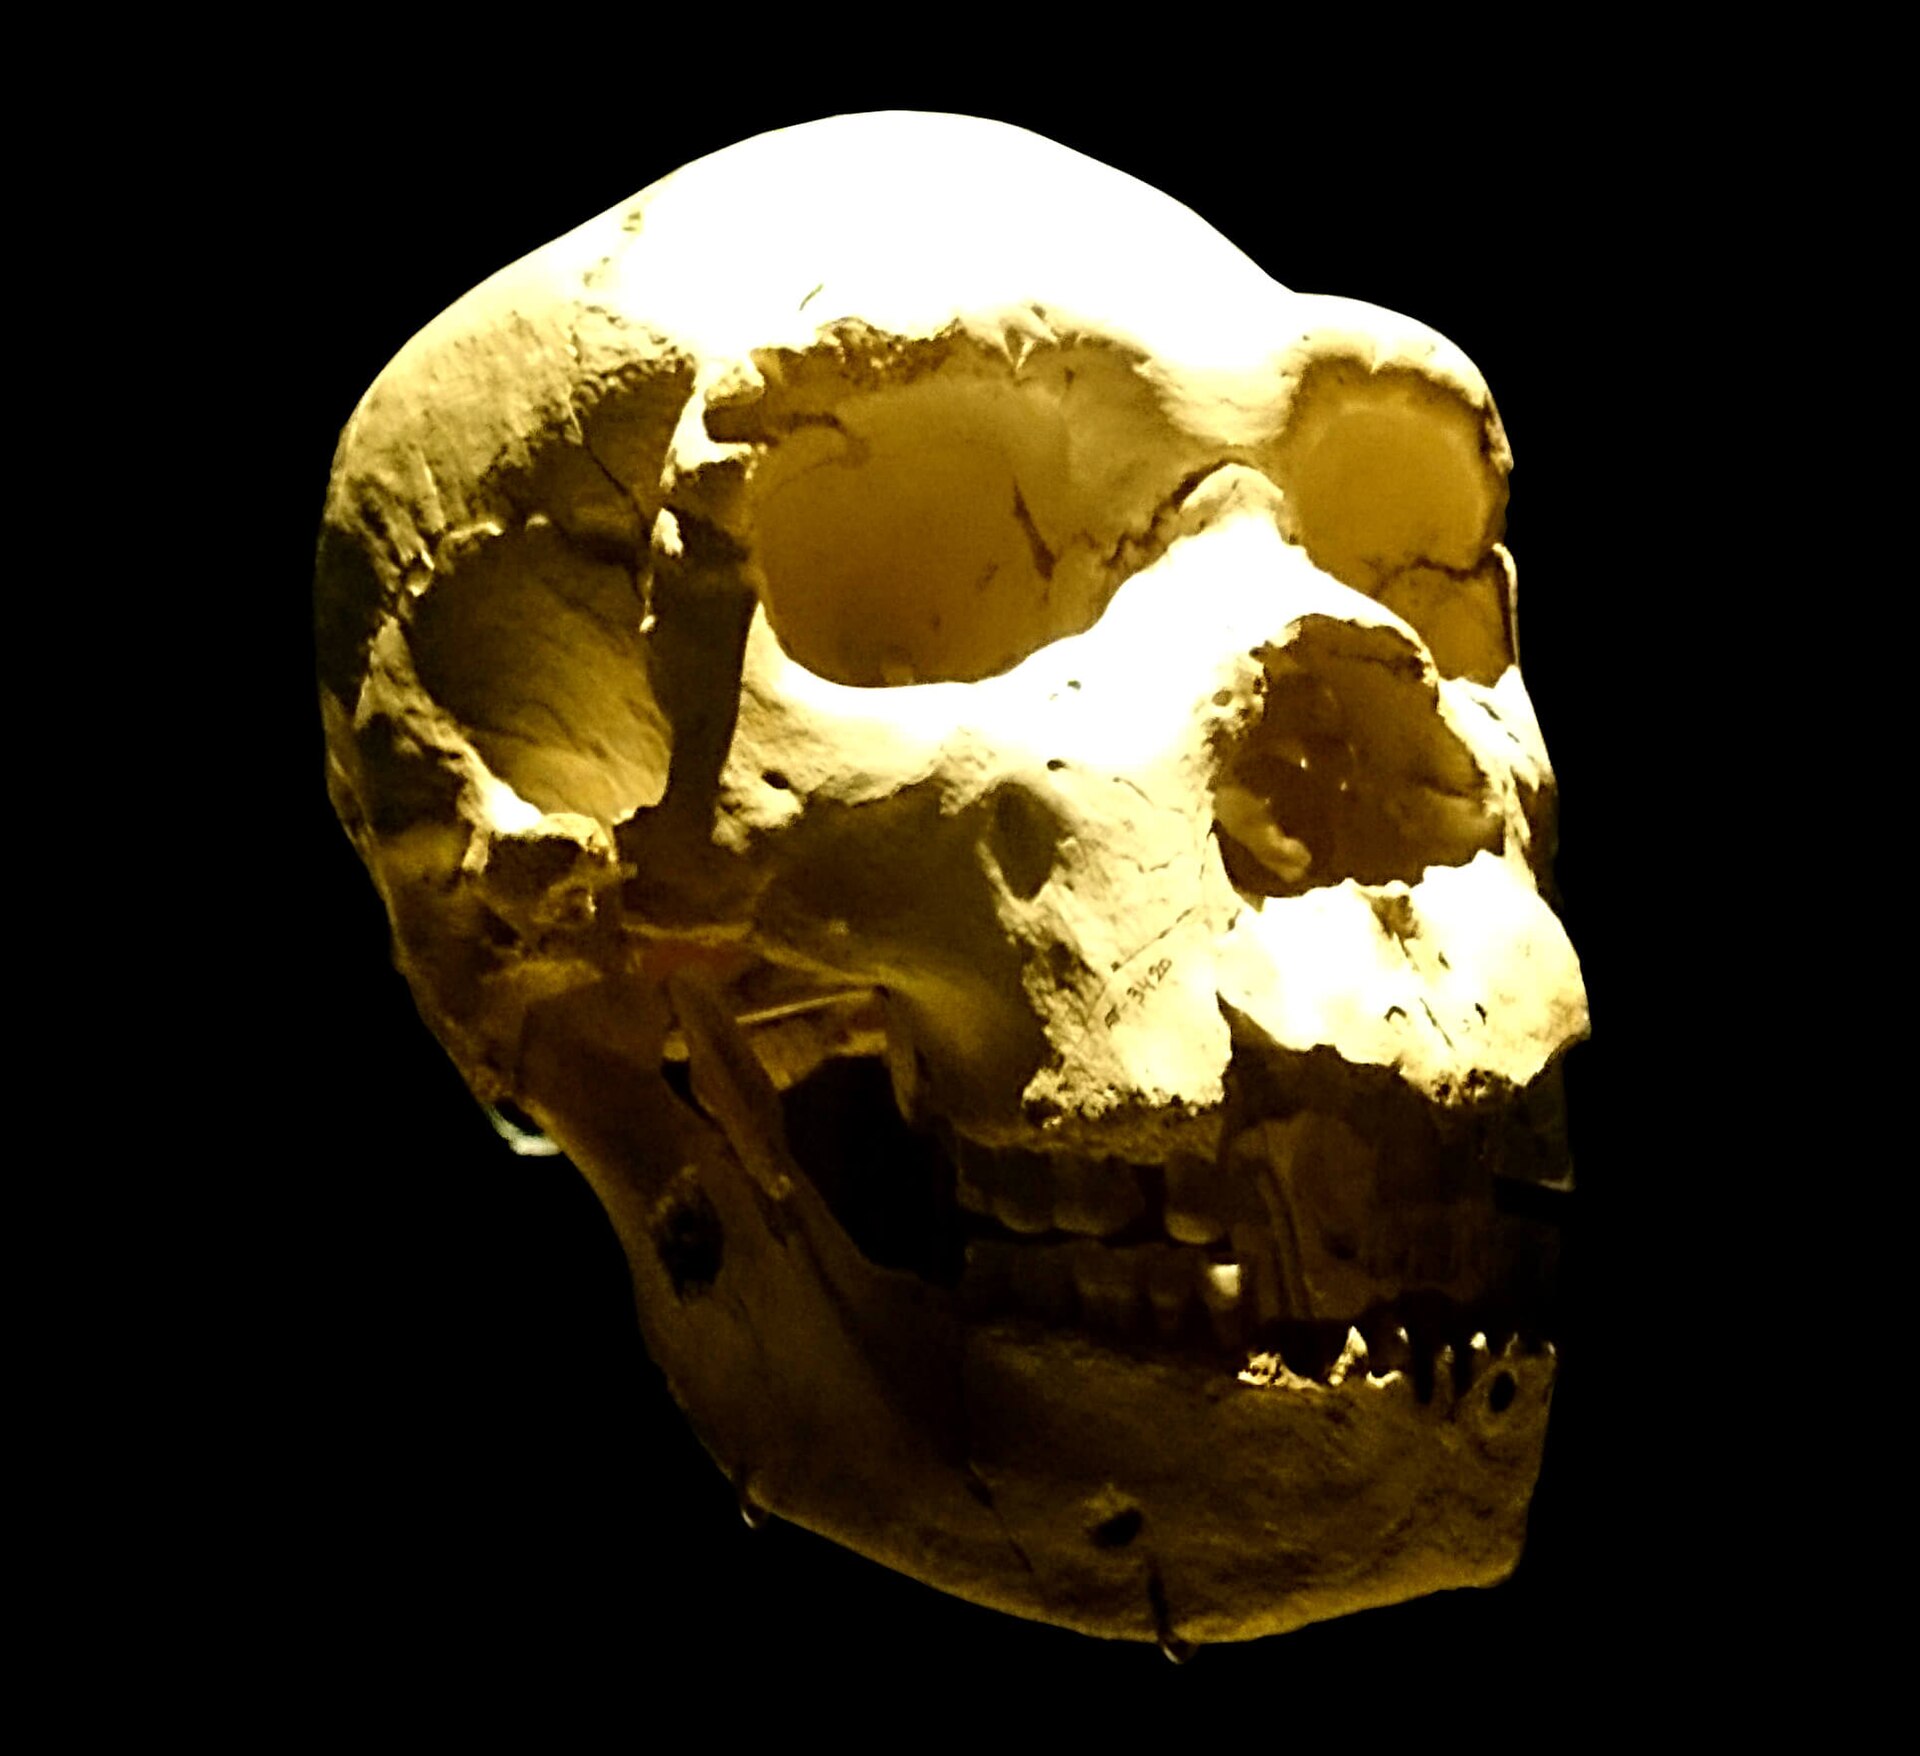
“镶嵌”并不意味着这些人必然是几个后来物种的一代混血;它首先描述的是性状组合。把一种演化结果直接归因为杂交,仍然需要独立的遗传或人口模型证据。同样,个别与尼安德特人相似的特征,也必须放在总体形态、变异范围和可能的趋同中衡量。
骨坑的人骨集中现象,还经常被扩展成关于葬俗或宗教的叙事。这里应把两项任务分开:遗骸怎样进入并聚集于洞穴,是埋藏学问题;死者生前在何种群体中生活,是人口与行为问题。即便人为搬运得到支持,也仍然需要额外论证,才能从处理遗体推到具有特定内容的信仰。
3. 线粒体像丹尼索瓦人,核 DNA 却偏向尼安德特人
骨坑的分子证据一度带来意外。Meyer 等人报告的线粒体基因组,与丹尼索瓦人的线粒体谱系更接近,而不是与当时已知的晚期尼安德特人线粒体谱系最接近。若直接用一条母系序列为整个群体命名,就容易据此宣布骨坑“其实是丹尼索瓦人”。11
2016 年,研究者进一步从两个骨坑标本中获得核 DNA 序列。核遗传结果支持它们与尼安德特人的关系更近,也将尼安德特人与丹尼索瓦人的群体分化约束在骨坑年代之前。这并不是说前一项研究检测错误,而是说明线粒体谱系史与整个人群的遗传史可能不同。12
造成这种差异的机制可以包括古老遗传变异的不同保留、后来的基因交流,以及某条线粒体谱系的替代。具体过程仍需更多样本与模型检验。对历史学者尤其有启发的是:一项新证据并不总是简单推翻旧证据,它也可能要求改变旧证据所能回答的问题。
这一案例还说明,必须区分“样品年代”“谱系分化年代”和“基因进入某群体的年代”。一块 43 万年前的骨头,可以携带更早分化的遗传谱系;该谱系又可能在更晚时期从某些群体中消失。把所有数字排成一列,并不能自动得到人口迁徙的连续故事。
4. 一个较为稳妥的形成模型
综合这些材料,较可取的工作模型是:欧洲中更新世人群在气候与栖息地反复变化的背景下,经历联系减弱、局部消失、重新扩散和再联系。自然选择可能影响某些适应性状;小群体中的遗传漂变与人口瓶颈,也可以改变性状和遗传变异的频率。后来被称为尼安德特人的特征组合,在这一过程中逐步形成。
这个模型应保留两个开放端。其一,并非每一个形态特征都已被证明是寒冷适应;某些特征可能与发育相关或受到漂变影响。其二,欧洲化石的时空缺口仍然很大,不能把若干相隔数万年、数百公里的标本,直接拼成一条没有断裂的祖孙链。
所以,尼安德特人的“诞生”可以写得很详细,却不应写成一则具有唯一地点、唯一祖先物种与唯一日期的起源传说。真正需要解释的,是一个具有持续亲缘联系而又内部多样的人口系统,怎样逐渐形成可辨认的演化特征。
五、长时段中的人群:地理、技术与社会生活
尼安德特人的分布从欧洲延伸至西亚,并到达中亚及南西伯利亚的阿尔泰地区。这里的“分布”是不同年代遗存的累积范围,不是一幅数十万年保持不变、处处同时有人居住的版图。山地、河谷与草原走廊的可通行程度会变化;今天相近的遗址,也未必在当时属于同一个社交网络。
南西伯利亚提供了一个具体例子。Kolobova 等人把恰吉尔斯卡娅的石器组合与欧洲材料比较,并结合已有遗传证据,提出尼安德特人至少通过两次不同的扩散进入该地区。较晚的恰吉尔斯卡娅组合与欧洲中旧石器时代两面器传统存在联系,而较早的丹尼索瓦洞穴组合并不相同。这一解释的力量来自技术、年代与遗传线索的结合;仅凭两件石器相似,还不足以证明人口迁徙。阿尔泰由此呈现为反复到达与人口更替的地区,而不是某个欧洲祖先群体定居后一直不变的远方据点。13
| 大致时期或地点 | 对本文问题的意义 | 不能据此假定的事项 |
|---|---|---|
| 约 43 万年前,骨坑 | 可识别的早期尼安德特人亲缘与镶嵌形态 | 当时已有全部晚期典型特征 |
| 约 17.65 万年前,布吕尼凯 | 洞穴深处的有组织建构与用火 | 已知道建构的仪式意义 |
| 晚更新世欧洲与西亚遗址 | 身体、技术和生计资料更为丰富 | 各地区共享一种完全相同的文化 |
| 约 6 万年前,阿尔泰部分遗址 | 可分析小型社区与亲属联系 | 边缘社区代表整个尼安德特人世界 |
| 约 5 万至 4 万年前 | 智人扩散、接触与各地区末次记录 | 接触、替代和灭绝在各地同步 |
1. 从身体差异到技术能力,避免跨越证据
较晚的尼安德特人常有粗壮骨骼、较宽躯干、相对较短的肢体末端,以及低长颅形、明显眉弓和突出的面部中段等特征。其中一些与寒冷环境下的热量保存具有相容性。但尼安德特人也生活于温暖时期和地中海环境,身体形态不能被当作每个个体生活场景的完整说明。脑容量范围与智人大量重叠,同样不能据此排出跨物种的智力名次。14
石器研究应关注原料选择、制坯、修整和使用的完整操作过程。预制石核技术要求在打下目标石片之前组织石核的形态和剥片面;但技术有自身的地区与时段变异,也可以被不同人群使用。莫斯特文化是考古学的技术分类,尤其在西亚,不能一看到莫斯特石器便直接宣布制造者的生物学身份。
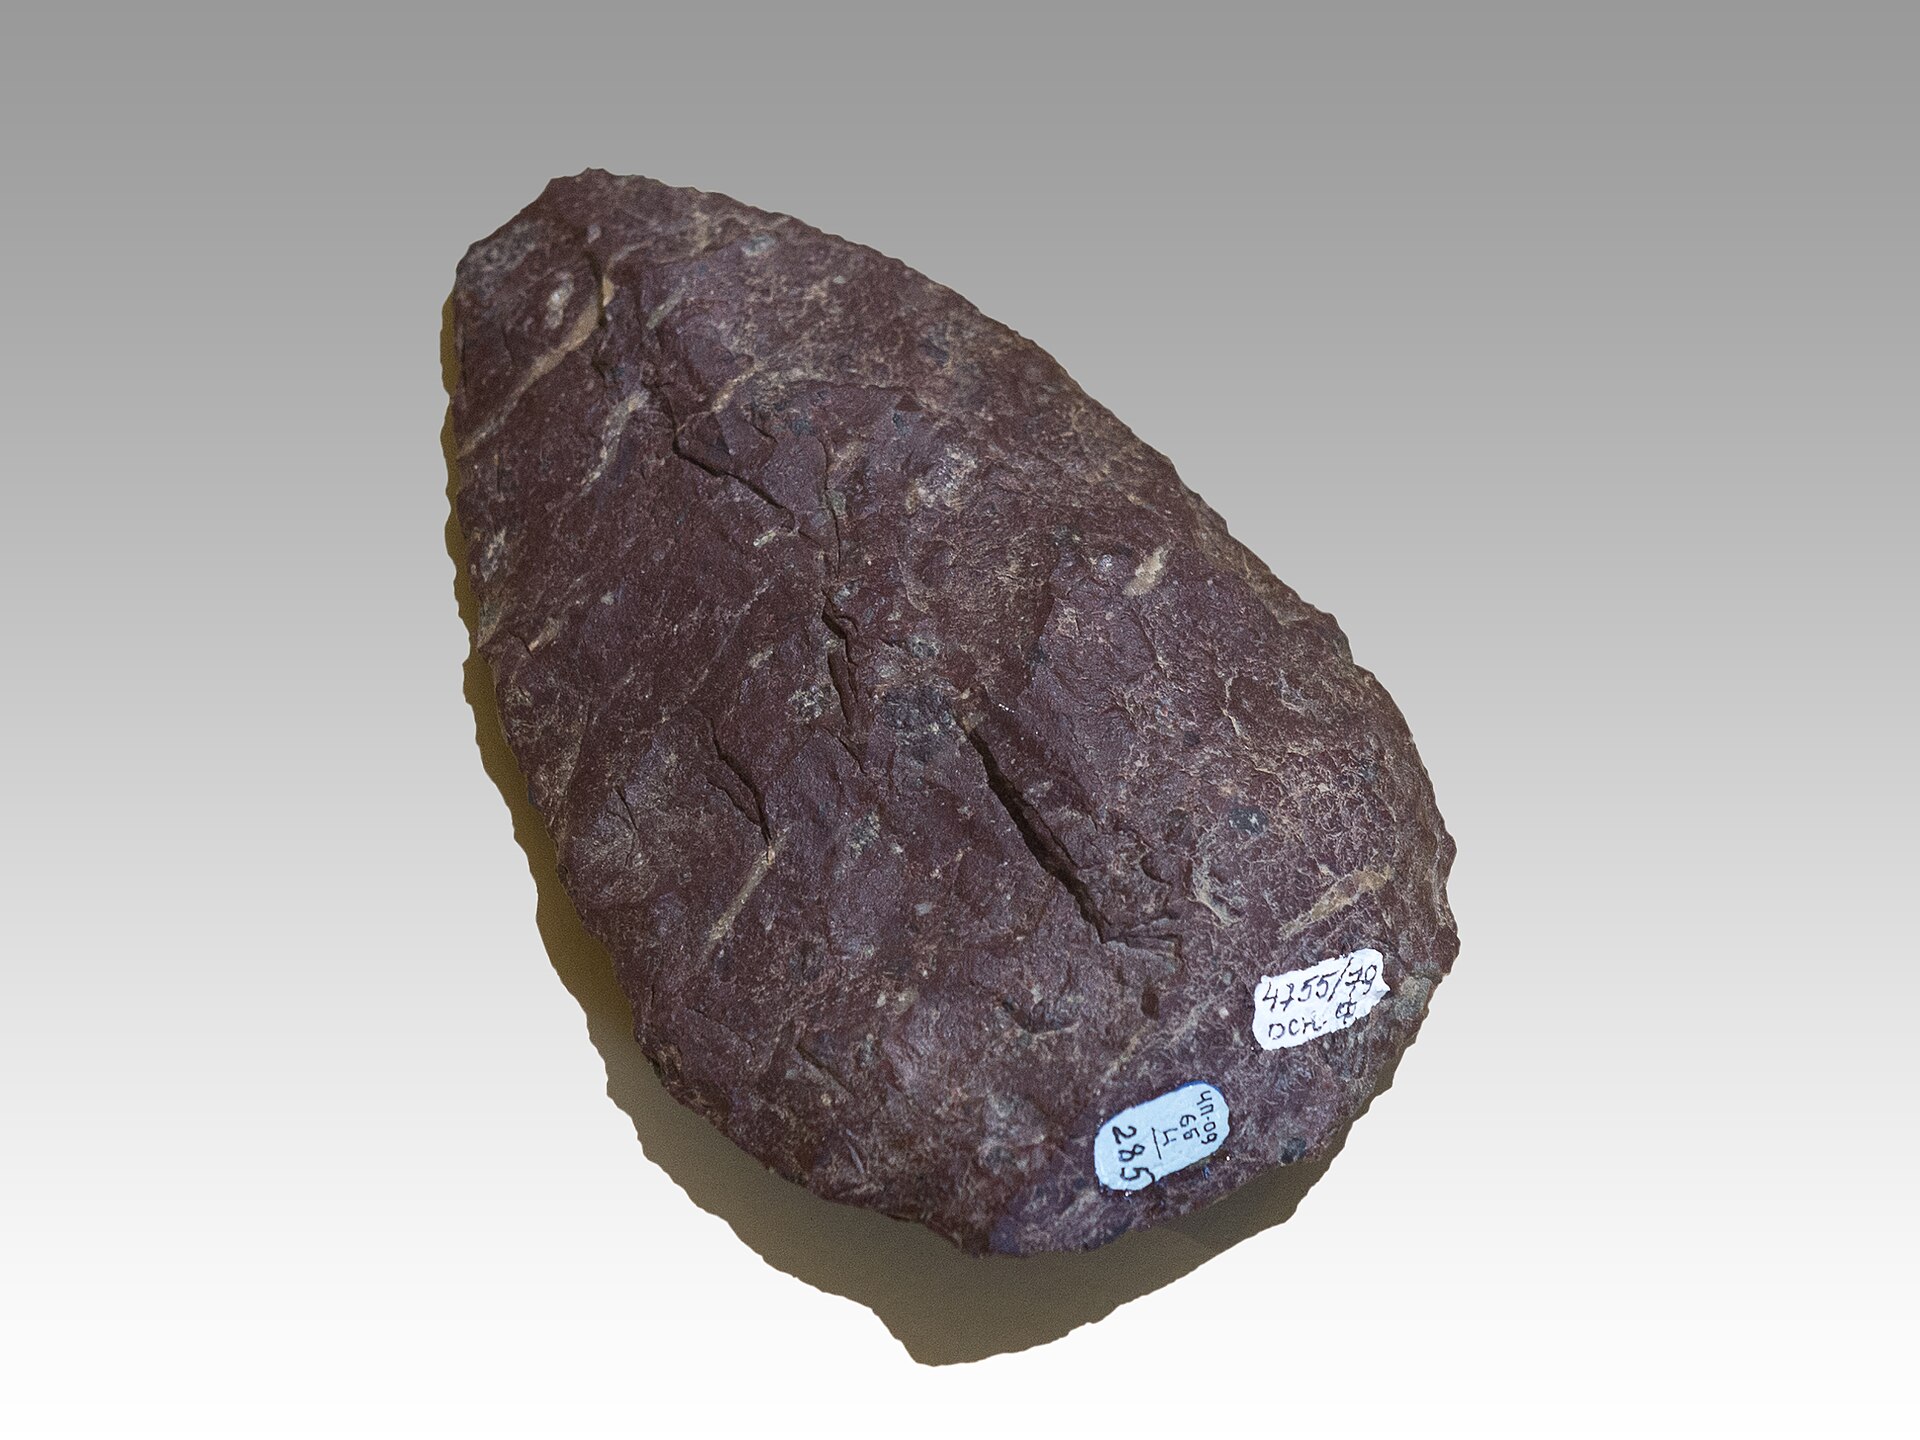
黏合材料提供了另一类行为证据。在一些中旧石器时代遗址,研究者识别出桦树焦油、树脂或沥青残留,支持将石器与其他部件结合使用的技术。其认定需要化学分析和使用痕迹,而非看起来像胶的黑色物质。不同制胶方法的操作复杂度也不相同;黏合剂的存在支持材料加工能力,却不能独自证明一种特定的高复杂度生产流程。15
食物同样需要多种材料互相约束。大型猎物遗骨与同位素结果经常凸显动物蛋白,但牙结石中的植物微体遗存补充了另一面。沙尼达与斯皮个体的牙结石研究识别出植物残留,部分淀粉变化与加工、加热相符。由此可以支持某些个体利用植物,却不能从少量残留物直接计算整个群体的植物热量比例,也不能把不同气候带的人群写成同一张食谱。16
2. 照护、埋葬与花粉:行为存在和意义解释的距离
沙尼达一号个体的伤病及长期存活,被用于讨论社会支持。他的身体状况表明生活可能受到显著限制,但伤残程度、仍能完成的活动,以及他人提供帮助的方式,需要分别评估。“很可能得到照护”有古病理与生存情境依据;“拥有某种完整福利制度”则超过了证据范围。17
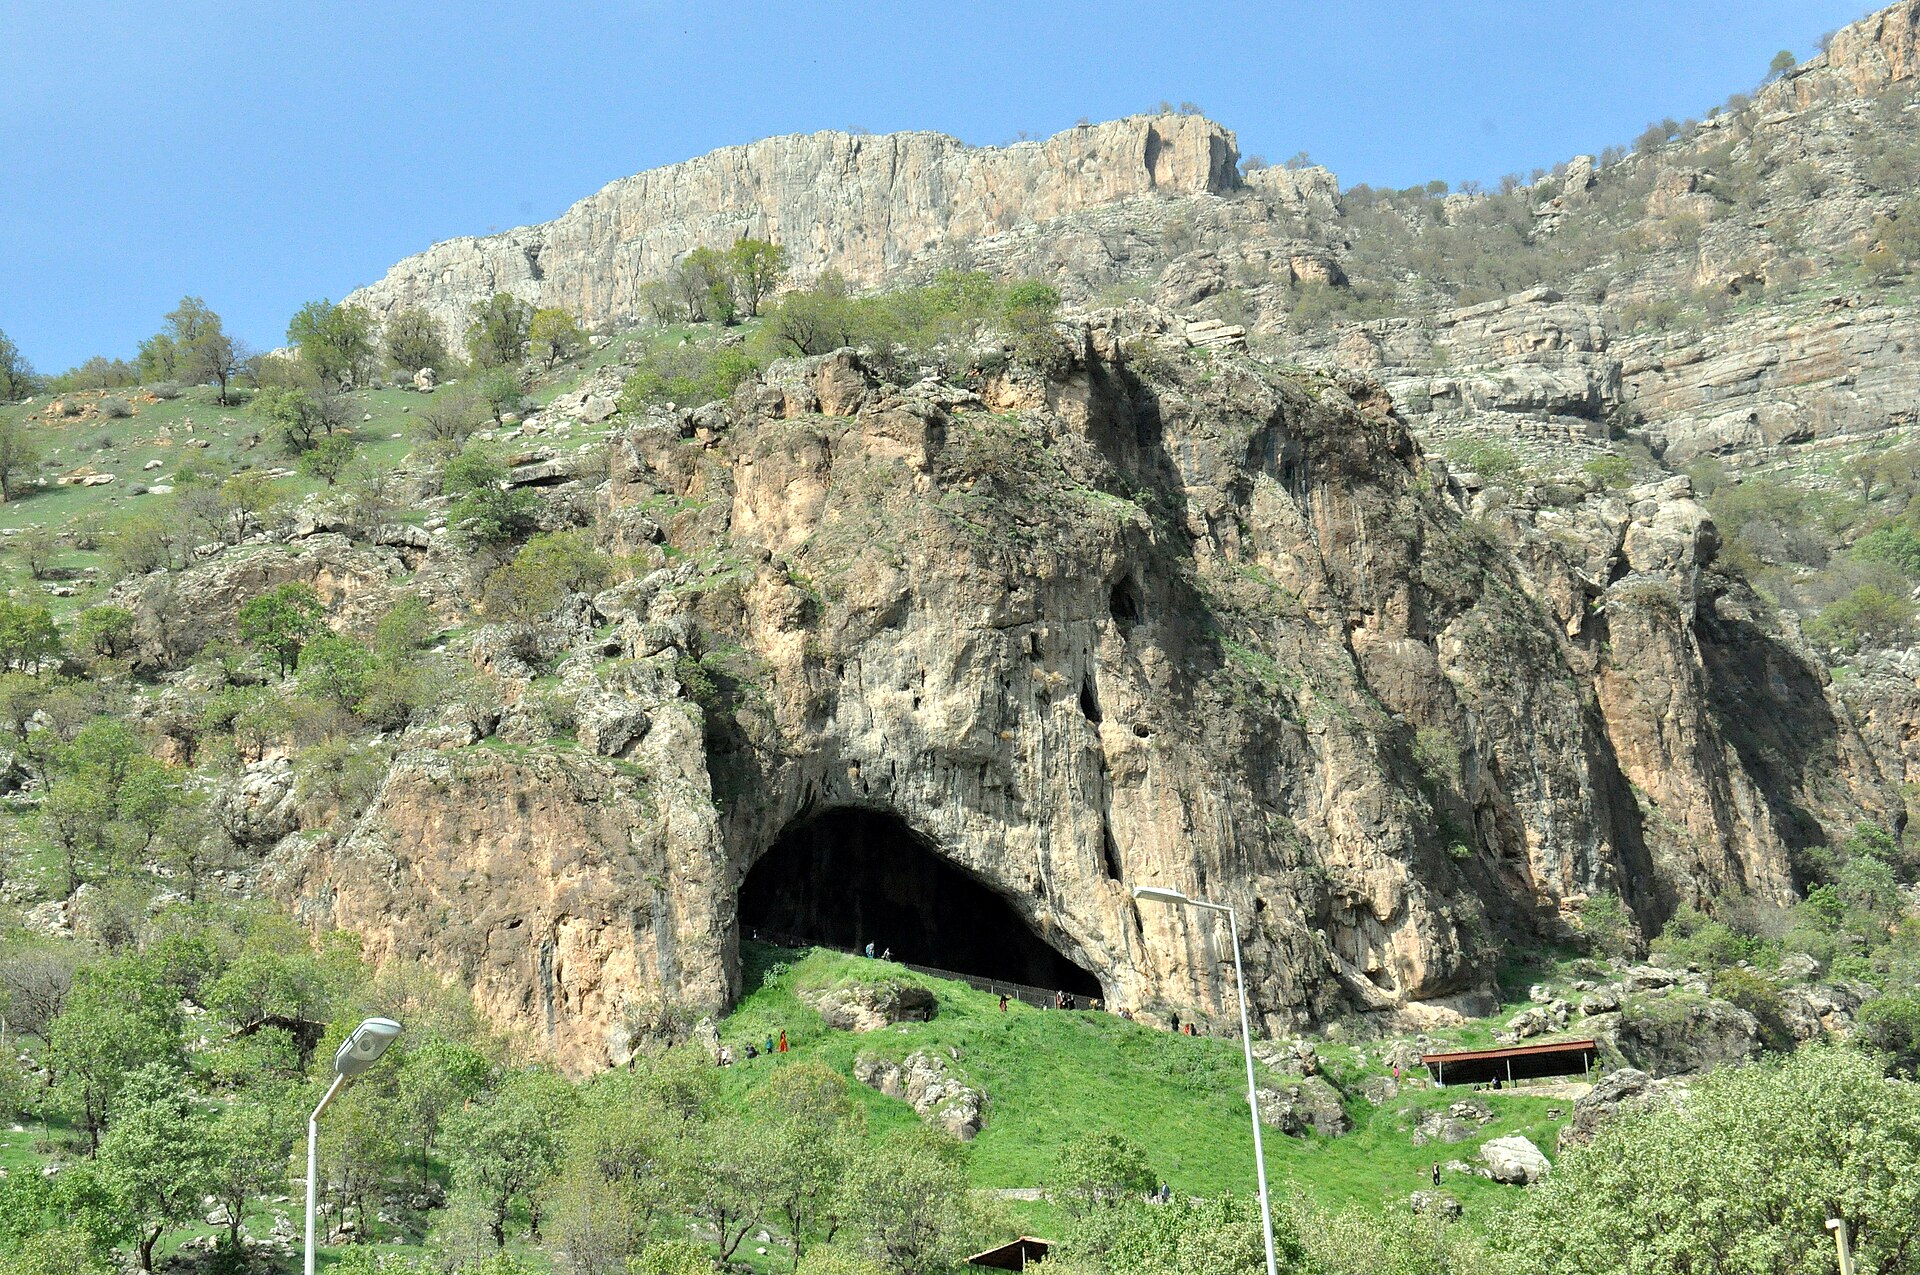
对有意埋葬的讨论,拉费拉西八号儿童提供了一个多材料案例。2020 年研究综合早期发掘记录、新调查、沉积、遗骸保存状态以及分子和年代证据,支持挖坑放置儿童遗体的解释。这种论证之所以重要,在于“骨架较完整”不再是唯一依据。但确认人为处置遗体,仍不能直接证明某种来世观念。18
沙尼达著名的“鲜花葬”则说明,动人的故事也必须接受埋藏学检验。2023 年的花粉复核认为,巢居独居蜂可能解释部分花粉团,传统的鲜花葬解释并不稳固。这一修正所针对的是花粉的来源及人为献花推断,不能被扩展成对所有尼安德特人埋葬行为的否定。19
3. 洞穴建构和刻划:认知讨论不等于灭绝判决
布吕尼凯洞穴中由折断石笋构成的环状结构,位于离洞口约 336 米处。测年约为 176.5 ± 2.1 ka,建构及用火支持人类在黑暗环境中组织活动的能力。其制造者通常被归于早期尼安德特人,但具体功能尚不清楚;把结构称为“神庙”,需要当前尚不具备的论证。20
拉罗什科塔尔洞穴的研究则综合封洞沉积测年、痕迹分析与实验比较,把部分壁面刻划归于尼安德特人。这里的关键年代约束来自洞穴何时被封闭,而不是对某条刻痕直接测得一个创作年份。原文给出的封闭年代估计为约 57 ± 3 ka,应连同其区间和推理关系理解。21
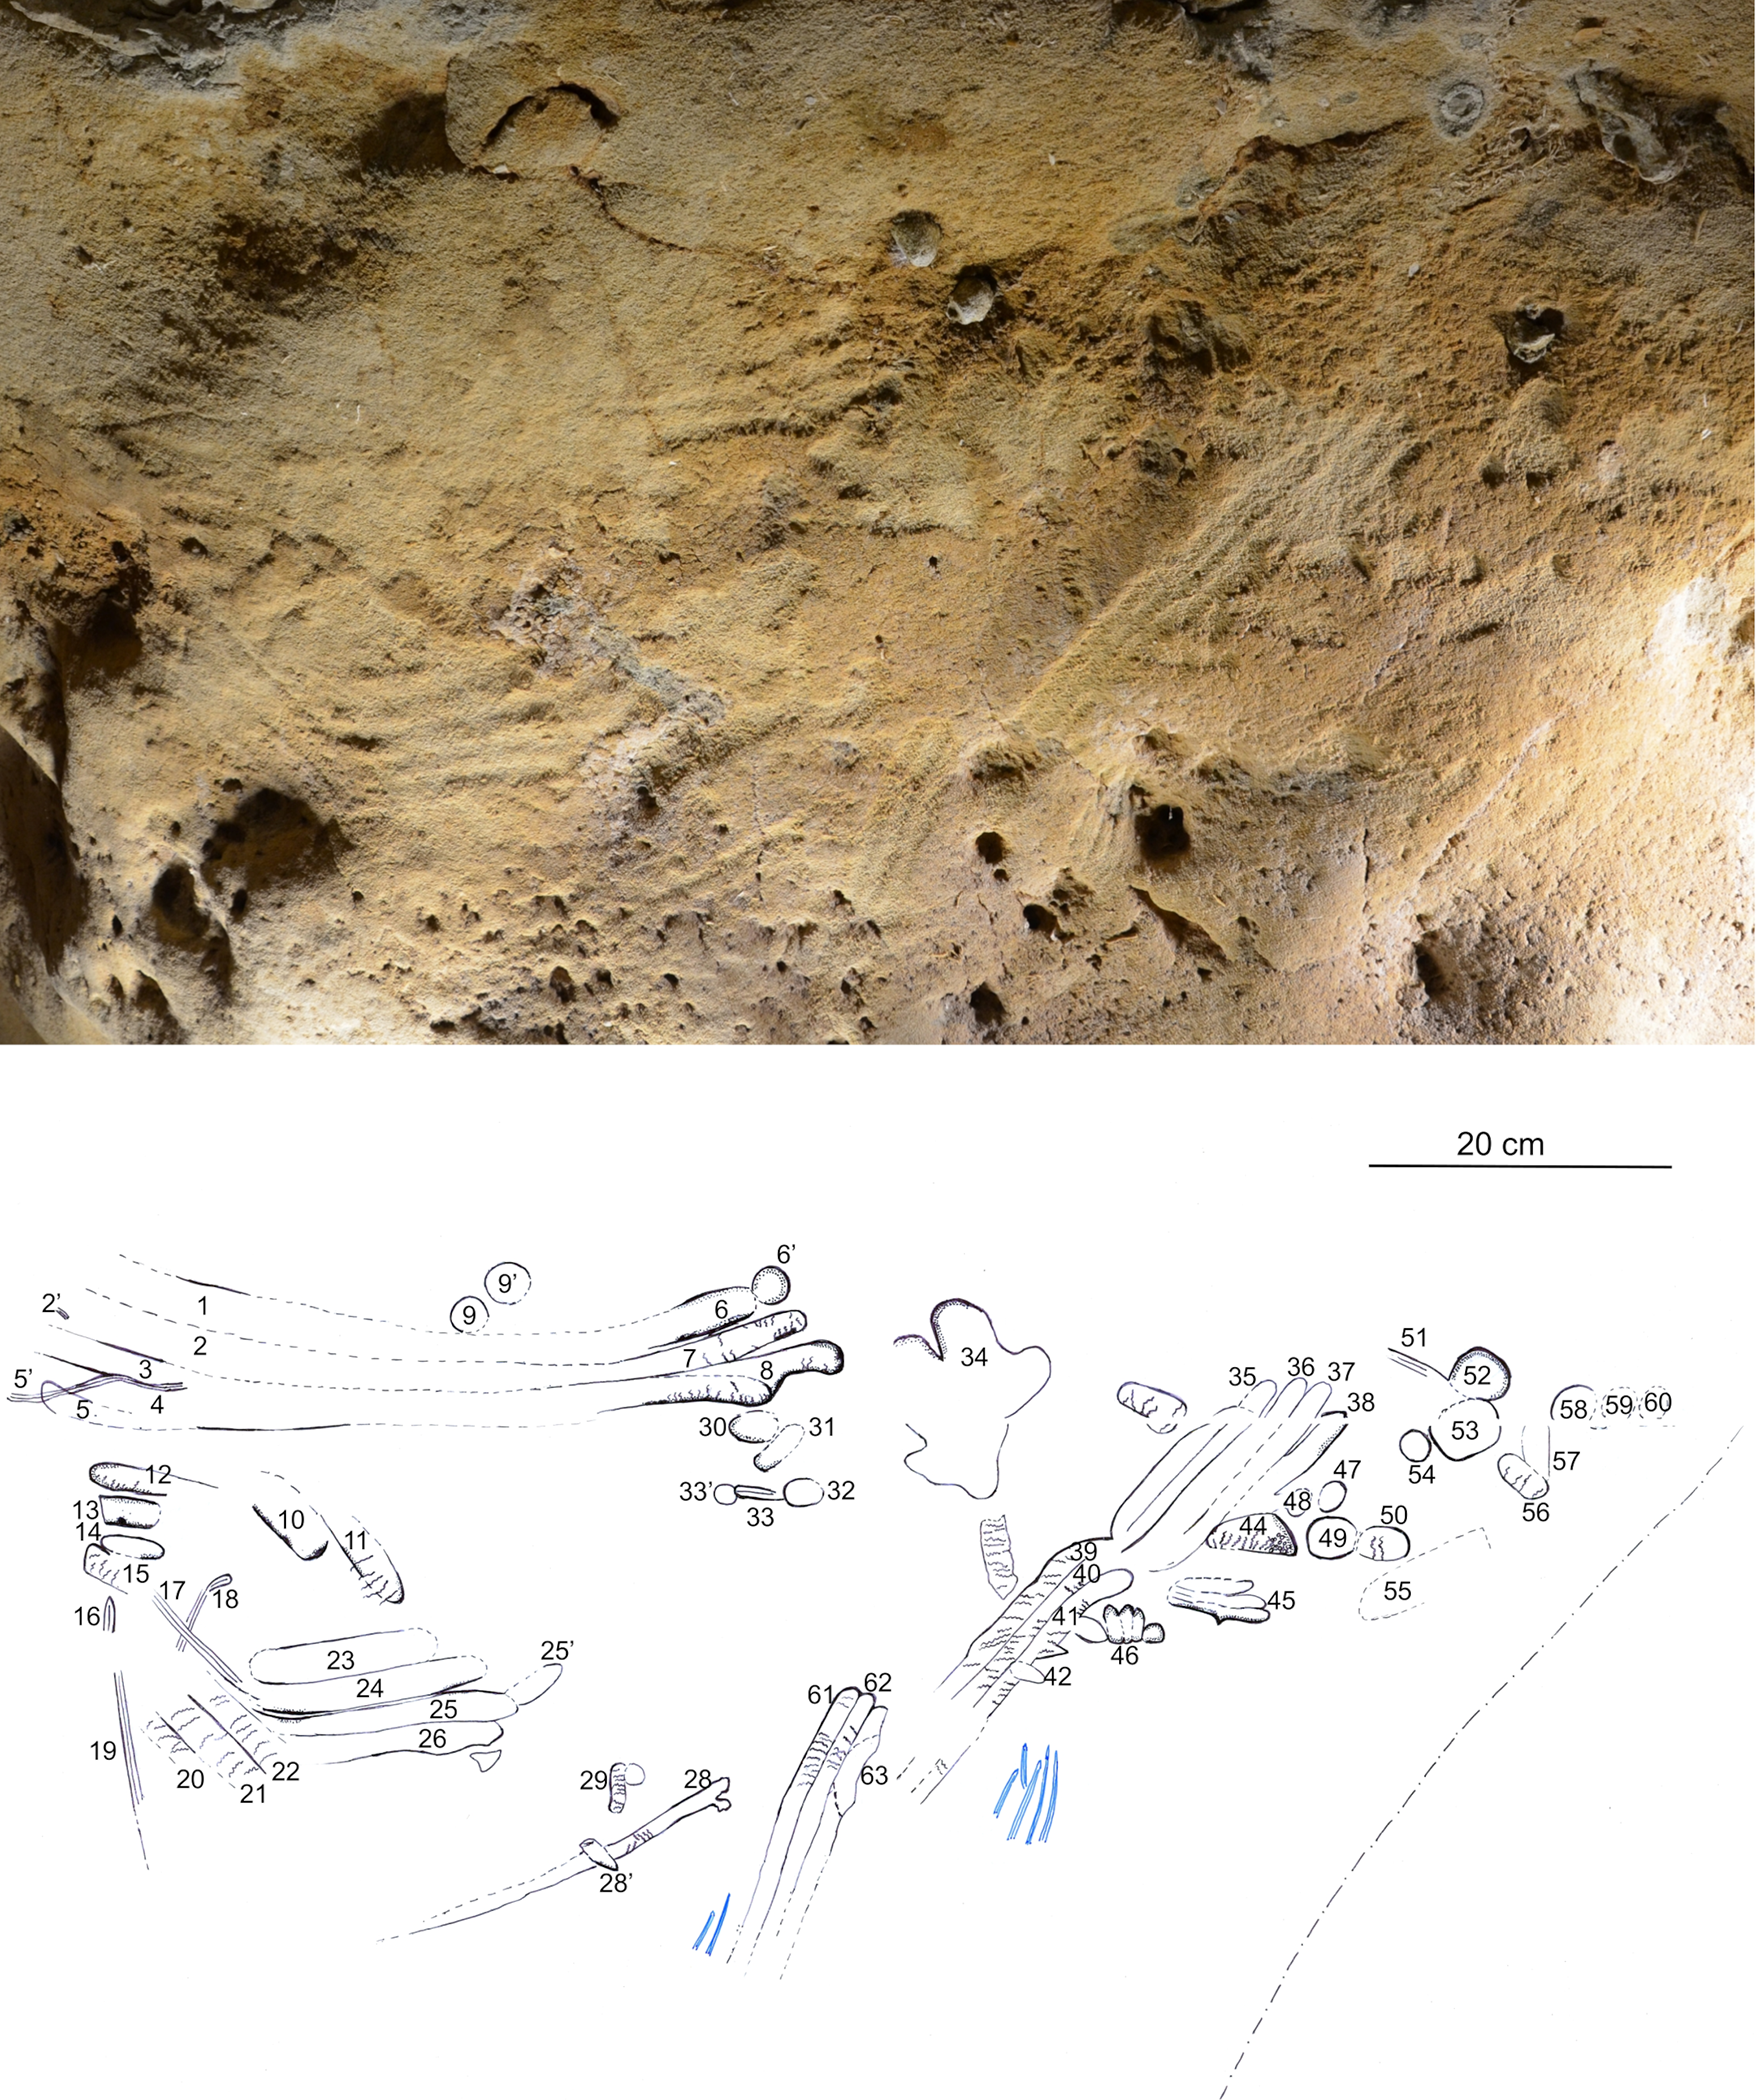
这些材料约束了过于简单的认知缺陷说,却也不要求我们反向宣布尼安德特人与所有时期的智人在全部认知能力上完全相同。更重要的是:某一能力是否存在,与某个人口系统是否能在特定历史条件下持续再生产,是两个问题。证明会制作工具或处理死者,并不会自动解决人口为何消失;同样,后来消失,也不能倒过来证明他们缺少这些能力。
六、智人的到来:多次扩散、局部接触与技术归属
尼安德特人消失之前,智人已经拥有一段漫长历史。杰贝尔伊尔胡德约三十万年前的化石,提供了非洲早期智人形态的重要证据;但这不能被转写成今天所有非洲与非洲以外人群都源于某个已确定的小村落。智人的起源本身涉及非洲内部长期的人口结构与交流。22
对于尼安德特人晚期命运,更直接的问题是:哪些智人群体在什么时间进入哪些地区,他们能否在那里持续存在,又是否与当地尼安德特人实际接触。将“走出非洲”写成一支队伍的一次行军,会混淆早期扩散、后来为现生人群作出主要遗传贡献的扩散,以及欧洲内部反复的人口变化。
1. 拉尼斯:石器的主人需要直接识别
德国拉尼斯的 Ilsenhöhle 遗址,为约 4.5 万年前智人已到达欧洲较高纬度提供了重要证据。2024 年研究结合旧藏与新发掘材料,利用蛋白质和遗传分析识别细碎人骨,重新讨论与 LRJ 技术组合相关的人群归属。其意义不仅在于把地图上的一个点标得更早,也在于说明:此前基于石器风格提出的身份判断,可以被直接生物学证据改写。23
同址的稳定同位素研究,支持这些智人进入了寒冷草原环境。因此,“尼安德特人适应寒冷,而智人必须等欧洲变暖后才能进入”的简单对照难以成立。双方对寒冷的具体应对方式仍可不同,但不能先把智人设定成无法在寒冷环境中生活的对照组。24
在更早进入欧洲的个别主张上,标本归属、层位完整性与年代范围还存在讨论。本文不需要先确定一个唯一的“首位欧洲智人”,才能分析末期接触;约 4.5 万年前已有智人在欧洲活动,与尼安德特人晚期记录形成时间重叠,是更稳固的起点。
2. 巴乔基罗与瓦塞:时间重叠之外的接触证据
保加利亚巴乔基罗洞穴的早期智人基因组,显示其中一些个体在较近的祖先世代具有尼安德特人祖源。罗马尼亚瓦塞一号(Oase 1)则提供了更具辨识力的例子:研究估计其基因组约 6%—9% 源于尼安德特人,若干很长的祖源片段支持在其约四至六代之前存在尼安德特人祖先。这里的几代关系是遗传推断,不能据此还原那位祖先的姓名、性别或家庭生活。2526
这类证据比“同一大陆上同时有人”更接近实际的人际联系,但仍然不等于已经证明双方大规模共同居住。欧洲尺度上的同时存在,可以包含几百公里以外的互不接触;遗传交流证明某些祖先链发生交汇,也未必发生在后来埋葬该个体的地点。
3. 过渡期文化不能充当未经检验的物种标签
沙泰尔佩龙文化及其骨器、装饰物,长期处于讨论中心。法国驯鹿洞穴的古蛋白质与古 DNA 研究,强化了相关层位中部分人骨的尼安德特人归属;然而,同层中每一种装饰品是否同样属于这些人的制作活动,还需要独立检查地层混合与遗物关联。原研究明确保留了某些器物关联问题。27
这一点关系到消失原因的解释。如果先把精细器物定义为“只有智人能制造”,再将发现这些器物的层位归给智人,最后又据此证明“智人技术更优”,论证就会形成循环。更可靠的做法是让人骨归属、器物关联和技术能力分别接受检验,再讨论它们是否指向同一历史过程。
七、“四万年前消失”是怎样得到的
1. 放射性碳年代不是直接印在骨头上的日期
接近五万年前时,样品中残存的放射性碳已经很少,外来碳的影响会变得突出。骨骼长期埋藏、出土后的保存处理及实验流程,都可能引入污染。测年工作首先必须确定正在测量的碳是否与目标个体或事件有可靠关系。
未经校正的放射性碳年龄,还不能直接与日历年并排比较,因为过去大气中碳十四含量并不恒定。IntCal20 等校正曲线把测量与相应的日历年代概率范围联系起来;曲线本身也有不确定性。在曲线较平缓或波动的区段,一个测量结果可能对应较宽甚至多个日历年代区间。28
铀系、光释光和其他方法提供不同种类的时间约束。例如,封洞沉积的光释光年龄约束的是特定沉积过程;覆盖刻划的碳酸盐可以提供刻划的最小年代。它们需要经过明确的地层关系,才成为人类活动的年代证据。技术名称越精密,越有必要说明它实际测定的对象。
2. 2014 年欧洲综合模型:大陆重叠不等于处处共居
Higham 等人的研究处理了从俄罗斯到西班牙的 40 个关键遗址,并将改进的放射性碳测年与贝叶斯年代模型结合。其估计的欧洲莫斯特文化结束范围为 41,030—39,260 cal BP,所报概率为 95.4%;与当时采用的早期智人年代对照,得到欧洲尺度上约 2,600—5,400 年的时间重叠。29
这些数字需要按原来的研究对象理解。莫斯特文化的结束不是对全部尼安德特人遗骸进行直接测年后得到的一张死亡名单;区间是模型结果,也会受到样品选择、异常值处理及地层先验的影响。本文保留个位数形式,是为了准确转录原论文,不能把这种排版精度误认为历史事件已经被确定到十年以内。
即使大陆尺度的重叠长达数千年,也可能由不同地区不同时间的存在记录共同构成。一地发生长期接触,另一地先失去尼安德特人、后来才迎来智人,两者都可以出现在同一个大陆重叠区间里。
3. 2021 年斯皮重测:旧结论为何会改变
比利时斯皮等地点的部分旧测年,曾使当地尼安德特人显得非常晚。Devièse 等人利用包括羟脯氨酸单化合物测年在内的方法重新检查材料,发现若干旧结果受到较新碳的影响。研究将西北欧消失的范围估计为 44,200—40,600 cal BP,同样报告 95.4% 的概率范围。30
这里被修正的并非尼安德特人的生物学身份,而是末期存续的时间框架。年代一旦改变,关于他们与特定智人群体、技术组合或环境事件的关系也必须重新评估。用旧年代讲述的“最后避难所”,不能只在正文里换一个数字而保持全部因果叙事不动。
4. 区域模型与南方避难所
针对法国与西班牙北部的一项 2022 年研究,利用不同于大陆综合研究的资料与最优线性估计方法,提出约 1,400—2,900 年的潜在共存区间。这与 2014 年结果不能直接视作同一参数的两次测量:地理范围、样本、分类对象和估计方法都不同。31
直布罗陀戈勒姆洞穴的晚存续主张,曾对“南方避难所”叙事产生很大影响。2006 年研究提出的很晚年代,建立在与莫斯特文化层关联的测年材料之上,而不是一具被直接测定到该年代的尼安德特人骨架。后续南伊比利亚年代学研究对若干晚期证据提出质疑。它们说明该地区需要重新审查,却也不能把未被重测的每个样品都宣布为错误。3233
| 研究 | 地理与材料范围 | 核心结果或作用 | 不能直接移植到全文的内容 |
|---|---|---|---|
| Higham 等,2014 | 欧洲 40 个关键遗址及文化层年代模型 | 末期范围约在四万年前;欧洲尺度存在数千年重叠 | 不能作为每一地区实际接触的持续时间 |
| Devièse 等,2021 | 以比利时人骨为核心的西北欧重测 | 修正部分过晚结果,说明污染足以改变末期叙事 | 不代表世界上全部尼安德特人的终结范围 |
| Djakovic 等,2022 | 法国与西班牙北部的区域资料 | 区域范围可能有约 1,400—2,900 年共存 | 不能与全欧洲区间直接求平均 |
| Finlayson 等,2006;Wood 等,2013 | 戈勒姆及南伊比利亚相关年代争论 | 暴露间接关联、前处理与区域推论的问题 | 不能把一处很晚的木炭日期直接变成人骨日期 |
此外,考古记录中的“末次出现”原则上早于或至多接近真实终结,因为最后若干代可能没有留下被发现并成功鉴定的遗存。相反,污染和错误关联又可能把记录人为拉晚。这两个方向的偏差必须同时考虑:不能因记录不全无限推迟灭绝,也不能将最后一件已知标本视为最后一个人。
八、气候如何进入因果解释
将气候列为候选因素,比证明某次气候变化导致某个人群消失容易得多。对尼安德特人末期问题而言,需要追踪的是具体链条:温度与降水变化如何影响植被,植被如何改变猎物数量与迁移,猎物变化又怎样影响人群的行动范围、营养和人口恢复。
Vidal-Cordasco 等人对伊比利亚的研究,将生态生产力模型与考古年代结合。在北部某些区域,尼安德特人消失与可供消费者利用的生物量下降相对应;地中海区域在寒冷阶段表现出相对稳定的条件。这为生态压力及区域差异提供支持,但相关性仍需结合考古和人口材料解释。34
一个有效的气候解释至少需要回答三个问题。第一,变化是否在时间上先于或覆盖目标地区的人口变化,而不是只在宽泛的“冰期”内大体同时?第二,资源变化能否达到足以影响生存和繁殖的程度?第三,为何某些群体消失,而处于相似环境中的其他群体仍然存在或后来重返?
尼安德特人曾经历许多气候周期,这并不自动排除最后阶段的气候作用:同样的环境冲击,可能对已经破碎化、恢复能力不同的人群产生不同后果。但既往长期存续意味着,我们不能仅凭“那时很冷”完成解释。还需要识别最后阶段在人口密度、迁徙补充、资源网络或竞争关系上的变化。
气候的空间分辨率同样重要。格陵兰冰芯记录可以帮助构建北大西洋环境变化的框架,但它不会自动告诉我们某一伊比利亚山谷当季的猎物分布。区域石笋、花粉、动物同位素和沉积资料可以补充联系;从远距离代理记录到地方人口命运之间的每一步,都应明确说明。
九、人口脆弱性:有效人口、社区和近亲繁殖
1. 人数少为什么重要,又为什么还不是完整答案
一个地方群体能否延续,取决于出生、死亡、迁入与迁出共同形成的收支。局部人口下降可以由死亡增加造成,也可以由出生减少、迁出增多或外来补充停止造成。若目标是解释尼安德特人独立人群的消失,还必须加上与其他人群生育后代、后代进入不同社会和繁殖网络的路径。
小群体对偶然事件更敏感。少数几位成年人的死亡、短时间内不利的年龄与性别结构,以及难以找到伴侣,都可能影响下一代。一个局部群体消失后,若邻近群体能够迁入补充,整个区域仍可能维持;若相邻群体也在衰退,局部损失就更难修复。这是把尼安德特人作为相互联系的人口系统来分析的理由。
Degioanni 等人的模型显示,在所采用的年龄结构与人口参数下,幅度不大的繁殖或存活率变化,可以在较长时间内产生严重后果。Vaesen 等人则讨论近亲繁殖、阿利效应与随机波动的组合。“阿利效应”在这里指群体过小时,伴侣获得或合作等过程受损,从而进一步降低人口增长能力。3536
模型所证明的是机制可以成立,不是已测得尼安德特人的真实生育率下降了多少。许多模型参数必须借助其他人群或动物的资料设定;不同参数组合也可能产生相似的终结时间。因此,模拟结果需要由独立证据约束,不能把一个能产生消失的模型当作唯一历史。
2. 有效人口数量不是人口普查
遗传学中的有效人口数量 Nₑ,描述实际群体在遗传漂变或谱系合并等方面,相当于多大的理想化群体。繁殖成功差异、性别比例、人口波动和空间结构,都可能使它偏离实际生活人数 N。一个模型给出较低 Nₑ,不等于当时整个欧亚大陆只剩相同数量的尼安德特人。
同样,“遗传多样性较低”“父母有较近的共同祖先”和“整个支系的有害遗传负担正在逐代增加”,属于不同命题。长段纯合可以为较近世代的亲缘联系提供线索;遗传多样性低也可能反映更早的瓶颈。若要证明持续恶化,必须比较不同年代与地区,并处理样本质量和检测方法的差异。
3. 恰吉尔斯卡娅:一个社区能够告诉我们多少
2022 年,Skov 等人分析阿尔泰两处洞穴的 13 名尼安德特人,识别出一对父女与另一对二级亲属。恰吉尔斯卡娅样本中的较多纯合片段支持小型社区;Y 染色体与线粒体多样性的差异,在模型中较适合由女性跨社区迁移解释。论文强调其位于已知分布区的东部边缘。37
“女性迁移”也不是对某套婚姻规范的直接观察。它是若干备选人口模型中较能解释数据的一种。迁移发生在何种年龄、是否与婚配有关、是否自愿、是否存在固定的居住规范,都无法由这一结果直接判定。对于历史学读者,把遗传模型的变量翻译成制度术语时,尤其需要控制推论强度。
4. 托林与西北欧:孤立不能成为全体命运的模板
2024 年公布的法国芒德兰洞穴个体“托林”(Thorin),与约 50—42 ka 的末期考古记录相关。研究将其谱系与其他晚期尼安德特人的较早分化估计在约 105 ka,并提出长期遗传隔离解释。这个较早分化时间并不是托林本人的死亡年龄,更不能把“他来自一个很古老的谱系”写成“发现了一具十万年前的骨架”。38
2026 年的西北欧研究则带来重要对照:比利时和法国多个遗址的 27 名个体,没有呈现阿尔泰部分样本那样的近亲交配信号;研究也未观察到所测有害遗传负担随时间增加,因而不支持持续遗传恶化主导消失的模型。其结果提示区域联系程度不同,而不是证明所有尼安德特人都没有人口困难。1
| 材料 | 支持的解释 | 外推时的主要限制 |
|---|---|---|
| 阿尔泰社区,2022 年研究 | 小型社区、近亲关系;女性跨社区迁移的模型较合适 | 位于分布区边缘,个体并非全体随机样本 |
| 法国托林,2024 年研究 | 部分晚期支系可能长期保持遗传隔离 | 单一个体及有限对照;谱系史不等于日常交往的全部历史 |
| 比利时与法国,2026 年研究 | 部分晚期群体可能规模更大或联系更充分 | 对特定区域与指标有效;不能排除其他形式的人口压力 |
把这些研究并置,得到的应是更细致的人口地理,而不是“科学家先证明近亲繁殖灭绝,后来又证明完全无关”的摇摆故事。新的样本改变了可外推的范围,也使某些过强命题不再成立。独立人群的消失仍然需要解释,但理由不能建立在已被区域证据削弱的普遍化之上。
十、竞争、灾害与暴力:哪些因果链尚未闭合
1. 竞争可以通过人口过程发生
智人的扩散改变了人群分布,因此竞争具有明确的历史可能性。双方可能使用相似的猎物、水源、石料和居住空间。不过,“竞争”还只是一个机制类别,必须进一步说明究竟发生在资源获取、繁殖成功、迁入补充还是其他环节。
例如,若某一人群的局部营地遭遇损失后,能够得到更持续的外来人口补充,其区域分布就可能逐渐扩大。这个结果并不要求每次接触都发生战斗,也不要求每个迁入者都具有更高的个体能力。Kolodny 与 Feldman 的中性模型,正是在不预设选择优势的条件下,考察迁入与随机更替如何产生替代。模型为某些常见必然性叙事提供反例,但不能单独证明实际替代完全是中性的。39
另一方面,工具、资源利用和社会联系的差异,也可能产生真实优势。要证实它们,需要比较接近时期、相近环境与可比保存条件下的材料。将许多年代的智人技术集中到一边,再将另一地区较早的尼安德特人样本放到另一边,得到的“优势”很可能包含时间、地理和样本选择造成的偏差。
较早的生态位竞争模型,曾把扩散与环境变化结合起来解释尼安德特人的地理收缩。其结果值得与后续区域生产力研究对读,因为相似的消失格局,有时既可以由资源衰退产生,也可以由竞争或迁徙造成。区分它们,需要新的观测限制,而不只是为同一张分布图增加更多解释词语。40
2. 暴力与疾病不能只靠情境合理性确证
尼安德特人与智人之间发生过局部暴力,在人类行为的可能范围内。然而,要把暴力提升为广域灭绝的主导解释,至少需要一组可靠定年、可识别受害者与施害关系、并具有相应时空规模的证据。个别创伤既可能来自群体内部,也可能与狩猎事故等有关,不能自动拼成一场覆盖欧洲的物种战争。
疾病传播同样具有机制上的可能性,但“陌生人群接触可以传播病原体”只是一般原理。若要解释特定人口终结,还需要识别病原、传播方向、宿主易感性与人口影响。本文所审查的关键年代与古基因组研究,尚不能为一场足以解释全部尼安德特人消失的特定疫情提供这样的证据链。
这并不要求将二者的实际贡献设为零;它要求将“尚未排除”与“已经证实”分开。一个因素能被想象出来,不足以给它分配历史中的主导地位。
3. 火山喷发为什么不能自动成为终结事件
约四万年前的坎帕尼亚大喷发,是另一项常被提出的候选冲击。火山灰层的重要价值之一,是能够在相距很远的沉积序列之间建立时间联系。Lowe 等人的研究利用火山灰对比指出,人群和文化变化的时序并不能简单归为喷发的直接后果,并讨论了尼安德特人与早期智人面对自然灾害的韧性。41
历史推断的要求很具体:如果某地尼安德特人已经在喷发之前消失,喷发就不能是该地最初消失的原因;如果另一些地区确实受灾,还要评估冲击强度、持续时间及人口恢复。灾害可以成为既有脆弱性的放大因素,但需要通过地区时序来证明,不能因为日期接近就获得全球解释权。
十一、融合的证据:什么留下了,什么结束了
1. 基因交流已有确证,方向与时期却不止一种
2010 年以来的古基因组研究,确立了尼安德特人向部分智人祖先群体的遗传贡献。此后又发现相反方向的交流:2016 年研究支持较早智人相关群体的遗传成分进入东部尼安德特人的祖先。双向交流意味着二者并非一直完全隔离;也意味着从一个方向的片段共享,推断整个接触历史时必须检查模型设定。42
2024 年 Li 等人的研究进一步讨论过去约二十万年中的反复交流,估计所研究尼安德特人基因组中有约 2.5%—3.7% 的智人相关祖源,并在校正交流影响后重新估计人口参数。这里的百分比描述模型识别的祖源成分,不是当时每个营地中智人与尼安德特人的人数比例;“智人相关”也不能在所有年代都直接等同于已知化石定义下的典型晚期智人。43
交流还涉及其他古老支系。2018 年公布的丹尼索瓦十一号个体,其基因组被识别为尼安德特人母亲与丹尼索瓦人父亲的第一代后代。这是一项能够落实到亲代关系的直接证据,但它记录的是尼安德特人与丹尼索瓦人的接触,不能移作智人吸收尼安德特人的证明。把不同交流对象分别标清,才能避免所有“混合”最终都被纳入同一场约四万年前的终结故事。44
2. 2024 年两项研究为何给出不同时间区间
Iasi 等人分析跨越约五万年的三百余个古代与现生基因组,提出今天所保留的绝大部分尼安德特人祖源,可追溯到约 50,500—43,500 年前的一段持续交流时期。研究还指出,自然选择对相关遗传变异的影响,在交流发生后的较早阶段就已显现。45
Sümer 等人的研究于 2024 年 12 月在线发表,编入 2025 年《自然》卷期;其利用拉尼斯与 Zlatý kůň 的早期智人基因组,将与已测非洲以外现代人共享的一次主要混合过程,估计在约 45,000—49,000 年前。两个区间部分重叠,支持的主要交流数量级接近,但资料、统计目标与时间模型并不完全一样。46
| 研究 | 所问的问题 | 时间结果的含义 |
|---|---|---|
| Iasi 等,2024 | 古今基因组中尼安德特人祖源的共同来源与时间变化 | 约 50.5—43.5 ka 的持续交流阶段解释大部分留存祖源 |
| Sümer 等,2024 在线/2025 卷期 | 早期欧洲智人如何约束共享混合事件 | 主要共享混合过程估计约 49—45 ka |
| 瓦塞、巴乔基罗等个体研究 | 某些早期智人是否另有较近的尼安德特人祖先 | 局部接触并未被一个共享主事件穷尽 |
研究这些年代还需要注意观察窗口:今天能够识别的祖源,是混合、漂变、自然选择和后来人口更替共同筛选后留下的结果。某次古老接触如果没有留下进入现生样本的后代,就可能在现生基因组中无法重建。因此,“今天主要保存的一次交流”不能被改写成“历史上只发生过一次交流”。
3. 部分遗传延续不等于整体吸收
设想两个小群体发生接触,少数人的后代进入一个不断扩大的智人人口网络,另一些尼安德特人群体则在别处消失。许多世代之后,前者的部分遗传片段可能广泛传播。这种情形既包含融合,也包含独立群体的终结。它与“最后所有尼安德特人都加入智人群体”的全面吸收,在现生祖源存在这一点上可能相容,却是不同的人口历史。
因此,论证需要回答的是比例问题:多少晚期群体参与交流、交流是否发生在其终结阶段、后代进入哪个人口网络、没有参与融合的群体发生了什么。现有证据确认融合是一条真实路径,但尚不足以替整个分布区计算它与死亡、迁移和人口替代之间的份额。
“被吸收”也不必具有统一的社会意义。基因组可以记录生育后代,却不能直接说明接触是短暂关系、持续共居、固定通婚还是其他安排;更不能从一段 DNA 推断关系中的自愿性、权力结构与情感。对历史学而言,承认这部分经验尚不可知,是保留研究对象的复杂性。
4. 今天的遗传遗产应怎样表述
今天具有主要欧亚祖源的人群通常保留百分之几、常概括为约百分之二的尼安德特人遗传成分,具体估计随人群与方法不同。一个人的比例、整个人群合并后覆盖到的古老片段,以及某个基因变异的频率,是三种不同统计量。它们不能被换算成某个人“百分之几属于另一物种”。46
非洲人群也不是这个历史之外的空白对照。Chen 等人的研究说明,非洲样本中可识别的相关信号,需要结合欧亚回迁与更早的双向交流解释;其中还须区分真正由尼安德特人进入现代人群的片段,以及早先进入尼安德特人、从而造成共享信号的智人相关序列。以完全“未混合”的现代群体为默认参照,会影响检测结果。47
尼安德特人的遗传贡献因而属于全人类人口史的一部分。其研究价值在于重建接触、选择和迁徙,并不提供现代族群价值的等级尺度。生物学祖源、考古文化与今天的身份归属,应分别处理。
十二、从“灭绝原因”走向可检验的人口史
面对多种解释,最后写一句“气候、竞争、近亲繁殖和融合共同作用”,看似周全,却仍可能缺乏解释力。多因素叙事也需要说明各因素通过什么机制相连、发生在哪些地区、在何时起效,以及什么证据能够让我们改变判断。
更有用的综合方式,是区分长期条件、近因、人口机制和观察结果。长期的小规模或空间破碎化,可能影响恢复能力;环境变化、迁入压力或灾害是候选冲击;出生、死亡、迁徙与跨群体生育是人口变化的实际环节;化石和技术组合的末次出现则是我们观察到的结果。这些层次之间需要连接,不能互相替代。
| 待检验的解释 | 应当寻找的独立证据 | 现阶段应保留的判断 |
|---|---|---|
| 气候与资源压力 | 具有足够分辨率的地方环境变化,以及与人群记录对应的时序 | 有区域支持,不能概括为全域同一冷事件 |
| 人口系统难以恢复 | 不同地点的占据、迁入、亲缘与多样性变化 | 机制合理,实际规模和变化路径仍不完整 |
| 近亲繁殖或遗传负担恶化 | 可比时间序列中的纯合、变异与负担变化 | 部分群体有近亲信号,持续全域恶化缺乏支持 |
| 智人竞争优势 | 同时期、相近环境中的资源、技术、网络与人口比较 | 具有可行机制,优势内容及地区贡献尚待量化 |
| 融合主导独立群体消失 | 终结前后的双向祖源与后代延续序列 | 融合真实存在,全面吸收和贡献比例未获确证 |
| 战争、特定疫情或单次灾害主导 | 可独立识别、定年并达到相应规模的直接证据 | 不能仅凭情境合理性确立为广域主因 |
这种分析也要求重新评估“人口”作为解释的地位。任何人群的消失最终都体现为人口不再延续;因此,仅说“人口下降导致灭绝”接近重述结果。真正的解释应指出,下降由什么过程造成、为什么没有被恢复,以及为什么其他人群在相似时间仍能维持或扩张。
尼安德特人的形成与消失,在这里呈现出一种相互呼应:形成过程中,局部隔离、漂变、选择与重新联系共同产生差异;消失过程中,地方人群的损失、补充受阻、迁入与融合又可能改变支系边界。但这种呼应只是一种分析视角,不意味着同一组因素必然以相反方向运行,更不意味着终结在形成之初就已注定。
未来最有辨别力的发现,未必是一件外形特别完整的头骨。它可能是一组具有可靠层位的末期遗骸、一段填补西南欧或西亚空白的古基因组序列,或者一份能将地方资源变化和占据史连接起来的高分辨率记录。只有当原本分离的证据链相互约束,我们才能从“哪些故事说得通”,进一步走向“哪些历史解释更能经受反证”。
尼安德特人已经不再作为独立人群延续,但关于他们的历史,仍在随着材料的重新辨认而改变。我们可以确认他们曾形成持续数十万年的演化支系,拥有多样的技术与社会生活,并与智人发生过真实的遗传交汇;我们也应准确保留最后阶段的人口结构、接触方式与地区因果尚未解决的部分。对一个没有留下自述的人群,考究的写作首先意味着让证据决定叙述能够走多远。
文献与图像说明
下列注释按正文首次引用排序,包含 45 项学术文献与 2 项机构资料。学术文献提供 DOI、作者及卷期信息;在线发表年与正式卷期年不同的条目另作说明。早期论文用于呈现问题与解释如何变化,不代表其全部结论均可直接沿用。本文属于公开材料的综合评述,未进行原始标本检验或重新计算古基因组模型。
八幅配图均保留署名与来源许可,图 5 为原论文的照片与描图组合,其余为真实摄影。现代遗址景观、博物馆展示和原始研究记录的证据性质已在图注中区分。图片下载来源、文件校验值及许可详见图像来源清单。
-
Bossoms Mesa, Alba; Essel, Elena; Peyrégne, Stéphane; et al. (2026). Genetic diversity of late Neanderthals in northwestern Europe. Nature, 655(8122): 409–417. ↩ ↩2
-
Meneganzin, Andra; Stringer, Chris (2024). Homo sapiens, Neanderthals and speciation complexity in palaeoanthropology. Evolutionary Journal of the Linnean Society, 3(1): kzae033. ↩
-
Smithsonian National Museum of Natural History, Human Origins Program. Ancient DNA and Neanderthals. 机构资料,用于发现史与研究史背景;访问日期:2026-09-11。关于 King 命名的具体年代与文本问题,另参 Walker 等(2021)。 ↩
-
Walker, James; Clinnick, David; White, Mark (2021). We Are Not Alone: William King and the Naming of the Neanderthals. American Anthropologist, 123(4): 805–818. ↩
-
Krings, Matthias; Stone, Anne; Schmitz, Ralf W; et al. (1997). Neandertal DNA Sequences and the Origin of Modern Humans. Cell, 90(1): 19–30. ↩
-
Green, Richard E.; Krause, Johannes; Briggs, Adrian W.; et al. (2010). A Draft Sequence of the Neandertal Genome. Science, 328(5979): 710–722. ↩
-
Prüfer, Kay; Racimo, Fernando; Patterson, Nick; et al. (2014). The complete genome sequence of a Neanderthal from the Altai Mountains. Nature, 505(7481): 43–49. 在线发表:2013-12-18;上列年份采用正式卷期。 ↩
-
Hublin, J. J. (2009). The origin of Neandertals. Proceedings of the National Academy of Sciences, 106(38): 16022–16027. ↩
-
Welker, Frido; Ramos-Madrigal, Jazmín; Gutenbrunner, Petra; et al. (2020). The dental proteome of Homo antecessor. Nature, 580(7802): 235–238. ↩
-
Arsuaga, J. L.; Martínez, I.; Arnold, L. J.; et al. (2014). Neandertal roots: Cranial and chronological evidence from Sima de los Huesos. Science, 344(6190): 1358–1363. ↩
-
Meyer, Matthias; Fu, Qiaomei; Aximu-Petri, Ayinuer; et al. (2014). A mitochondrial genome sequence of a hominin from Sima de los Huesos. Nature, 505(7483): 403–406. 在线发表:2013-12-04;上列年份采用正式卷期。 ↩
-
Meyer, Matthias; Arsuaga, Juan-Luis; de Filippo, Cesare; et al. (2016). Nuclear DNA sequences from the Middle Pleistocene Sima de los Huesos hominins. Nature, 531(7595): 504–507. ↩
-
Kolobova, Kseniya A.; Roberts, Richard G.; Chabai, Victor P.; et al. (2020). Archaeological evidence for two separate dispersals of Neanderthals into southern Siberia. Proceedings of the National Academy of Sciences, 117(6): 2879–2885. ↩
-
Smithsonian National Museum of Natural History, Human Origins Program. Homo neanderthalensis;Bodies. 机构资料,用于形态及身体适应的概览;访问日期:2026-09-11。 ↩
-
Doronicheva, E. V.; Golovanova, L. V.; Kostina, J. V.; et al. (2022). Functional characterization of Mousterian tools from the Caucasus using comprehensive use-wear and residue analysis. Scientific Reports, 12(1): 17421. ↩
-
Henry, Amanda G.; Brooks, Alison S.; Piperno, Dolores R. (2011). Microfossils in calculus demonstrate consumption of plants and cooked foods in Neanderthal diets (Shanidar III, Iraq; Spy I and II, Belgium). Proceedings of the National Academy of Sciences, 108(2): 486–491. 在线发表:2010-12-27;上列年份采用正式卷期。 ↩
-
Trinkaus, Erik; Villotte, Sébastien (2017). External auditory exostoses and hearing loss in the Shanidar 1 Neandertal. PLOS ONE, 12(10): e0186684. ↩
-
Balzeau, Antoine; Turq, Alain; Talamo, Sahra; et al. (2020). Pluridisciplinary evidence for burial for the La Ferrassie 8 Neandertal child. Scientific Reports, 10(1): 21230. ↩
-
Hunt, Chris O.; Pomeroy, Emma; Reynolds, Tim; et al. (2023). Shanidar et ses fleurs? Reflections on the palynology of the Neanderthal ‘Flower Burial’ hypothesis. Journal of Archaeological Science, 159: 105822. ↩
-
Jaubert, Jacques; Verheyden, Sophie; Genty, Dominique; et al. (2016). Early Neanderthal constructions deep in Bruniquel Cave in southwestern France. Nature, 534(7605): 111–114. ↩
-
Marquet, Jean-Claude; Freiesleben, Trine Holm; Thomsen, Kristina Jørkov; et al. (2023). The earliest unambiguous Neanderthal engravings on cave walls: La Roche-Cotard, Loire Valley, France. PLOS ONE, 18(6): e0286568. ↩
-
Hublin, Jean-Jacques; Ben-Ncer, Abdelouahed; Bailey, Shara E.; et al. (2017). New fossils from Jebel Irhoud, Morocco and the pan-African origin of Homo sapiens. Nature, 546(7657): 289–292. ↩
-
Mylopotamitaki, Dorothea; Weiss, Marcel; Fewlass, Helen; et al. (2024). Homo sapiens reached the higher latitudes of Europe by 45,000 years ago. Nature, 626(7998): 341–346. ↩
-
Pederzani, Sarah; Britton, Kate; Trost, Manuel; et al. (2024). Stable isotopes show Homo sapiens dispersed into cold steppes ~45,000 years ago at Ilsenhöhle in Ranis, Germany. Nature Ecology & Evolution, 8(3): 578–588. ↩
-
Hajdinjak, Mateja; Mafessoni, Fabrizio; Skov, Laurits; et al. (2021). Initial Upper Palaeolithic humans in Europe had recent Neanderthal ancestry. Nature, 592(7853): 253–257. ↩
-
Fu, Qiaomei; Hajdinjak, Mateja; Moldovan, Oana Teodora; et al. (2015). An early modern human from Romania with a recent Neanderthal ancestor. Nature, 524(7564): 216–219. ↩
-
Welker, Frido; Hajdinjak, Mateja; Talamo, Sahra; et al. (2016). Palaeoproteomic evidence identifies archaic hominins associated with the Châtelperronian at the Grotte du Renne. Proceedings of the National Academy of Sciences, 113(40): 11162–11167. ↩
-
Reimer, Paula J; Austin, William E N; Bard, Edouard; et al. (2020). The IntCal20 Northern Hemisphere Radiocarbon Age Calibration Curve (0–55 cal kBP). Radiocarbon, 62(4): 725–757. ↩
-
Higham, Tom; Douka, Katerina; Wood, Rachel; et al. (2014). The timing and spatiotemporal patterning of Neanderthal disappearance. Nature, 512(7514): 306–309. ↩
-
Devièse, Thibaut; Abrams, Grégory; Hajdinjak, Mateja; et al. (2021). Reevaluating the timing of Neanderthal disappearance in Northwest Europe. Proceedings of the National Academy of Sciences, 118(12): e2022466118. ↩
-
Djakovic, Igor; Key, Alastair; Soressi, Marie (2022). Optimal linear estimation models predict 1400–2900 years of overlap between Homo sapiens and Neandertals prior to their disappearance from France and northern Spain. Scientific Reports, 12(1): 15000. ↩
-
Finlayson, Clive; Giles Pacheco, Francisco; Rodríguez-Vidal, Joaquín; et al. (2006). Late survival of Neanderthals at the southernmost extreme of Europe. Nature, 443(7113): 850–853. ↩
-
Wood, Rachel E.; Barroso-Ruíz, Cecilio; Caparrós, Miguel; et al. (2013). Radiocarbon dating casts doubt on the late chronology of the Middle to Upper Palaeolithic transition in southern Iberia. Proceedings of the National Academy of Sciences, 110(8): 2781–2786. ↩
-
Vidal-Cordasco, M.; Ocio, D.; Hickler, T.; et al. (2022). Ecosystem productivity affected the spatiotemporal disappearance of Neanderthals in Iberia. Nature Ecology & Evolution, 6(11): 1644–1657. ↩
-
Degioanni, Anna; Bonenfant, Christophe; Cabut, Sandrine; et al. (2019). Living on the edge: Was demographic weakness the cause of Neanderthal demise?. PLOS ONE, 14(5): e0216742. ↩
-
Vaesen, Krist; Scherjon, Fulco; Hemerik, Lia; et al. (2019). Inbreeding, Allee effects and stochasticity might be sufficient to account for Neanderthal extinction. PLOS ONE, 14(11): e0225117. ↩
-
Skov, Laurits; Peyrégne, Stéphane; Popli, Divyaratan; et al. (2022). Genetic insights into the social organization of Neanderthals. Nature, 610(7932): 519–525. ↩
-
Slimak, Ludovic; Vimala, Tharsika; Seguin-Orlando, Andaine; et al. (2024). Long genetic and social isolation in Neanderthals before their extinction. Cell Genomics, 4(9): 100593. ↩
-
Kolodny, Oren; Feldman, Marcus W. (2017). A parsimonious neutral model suggests Neanderthal replacement was determined by migration and random species drift. Nature Communications, 8(1): 1040. ↩
-
Banks, William E.; d’Errico, Francesco; Peterson, A. Townsend; et al. (2008). Neanderthal Extinction by Competitive Exclusion. PLoS ONE, 3(12): e3972. ↩
-
Lowe, John; Barton, Nick; Blockley, Simon; et al. (2012). Volcanic ash layers illuminate the resilience of Neanderthals and early modern humans to natural hazards. Proceedings of the National Academy of Sciences, 109(34): 13532–13537. ↩
-
Kuhlwilm, Martin; Gronau, Ilan; Hubisz, Melissa J.; et al. (2016). Ancient gene flow from early modern humans into Eastern Neanderthals. Nature, 530(7591): 429–433. ↩
-
Li, Liming; Comi, Troy J.; Bierman, Rob F.; et al. (2024). Recurrent gene flow between Neanderthals and modern humans over the past 200,000 years. Science, 385(6705): eadi1768. ↩
-
Slon, Viviane; Mafessoni, Fabrizio; Vernot, Benjamin; et al. (2018). The genome of the offspring of a Neanderthal mother and a Denisovan father. Nature, 561(7721): 113–116. ↩
-
Iasi, Leonardo N. M.; Chintalapati, Manjusha; Skov, Laurits; et al. (2024). Neanderthal ancestry through time: Insights from genomes of ancient and present-day humans. Science, 386(6727): eadq3010. ↩
-
Sümer, Arev P.; Rougier, Hélène; Villalba-Mouco, Vanessa; et al. (2025). Earliest modern human genomes constrain timing of Neanderthal admixture. Nature, 638(8051): 711–717. 在线发表:2024-12-12;上列年份采用正式卷期。 ↩ ↩2
-
Chen, Lu; Wolf, Aaron B.; Fu, Wenqing; et al. (2020). Identifying and Interpreting Apparent Neanderthal Ancestry in African Individuals. Cell, 180(4): 677–687.e16. ↩


评论